
 EN
 DE
 FR
 ES
 PT
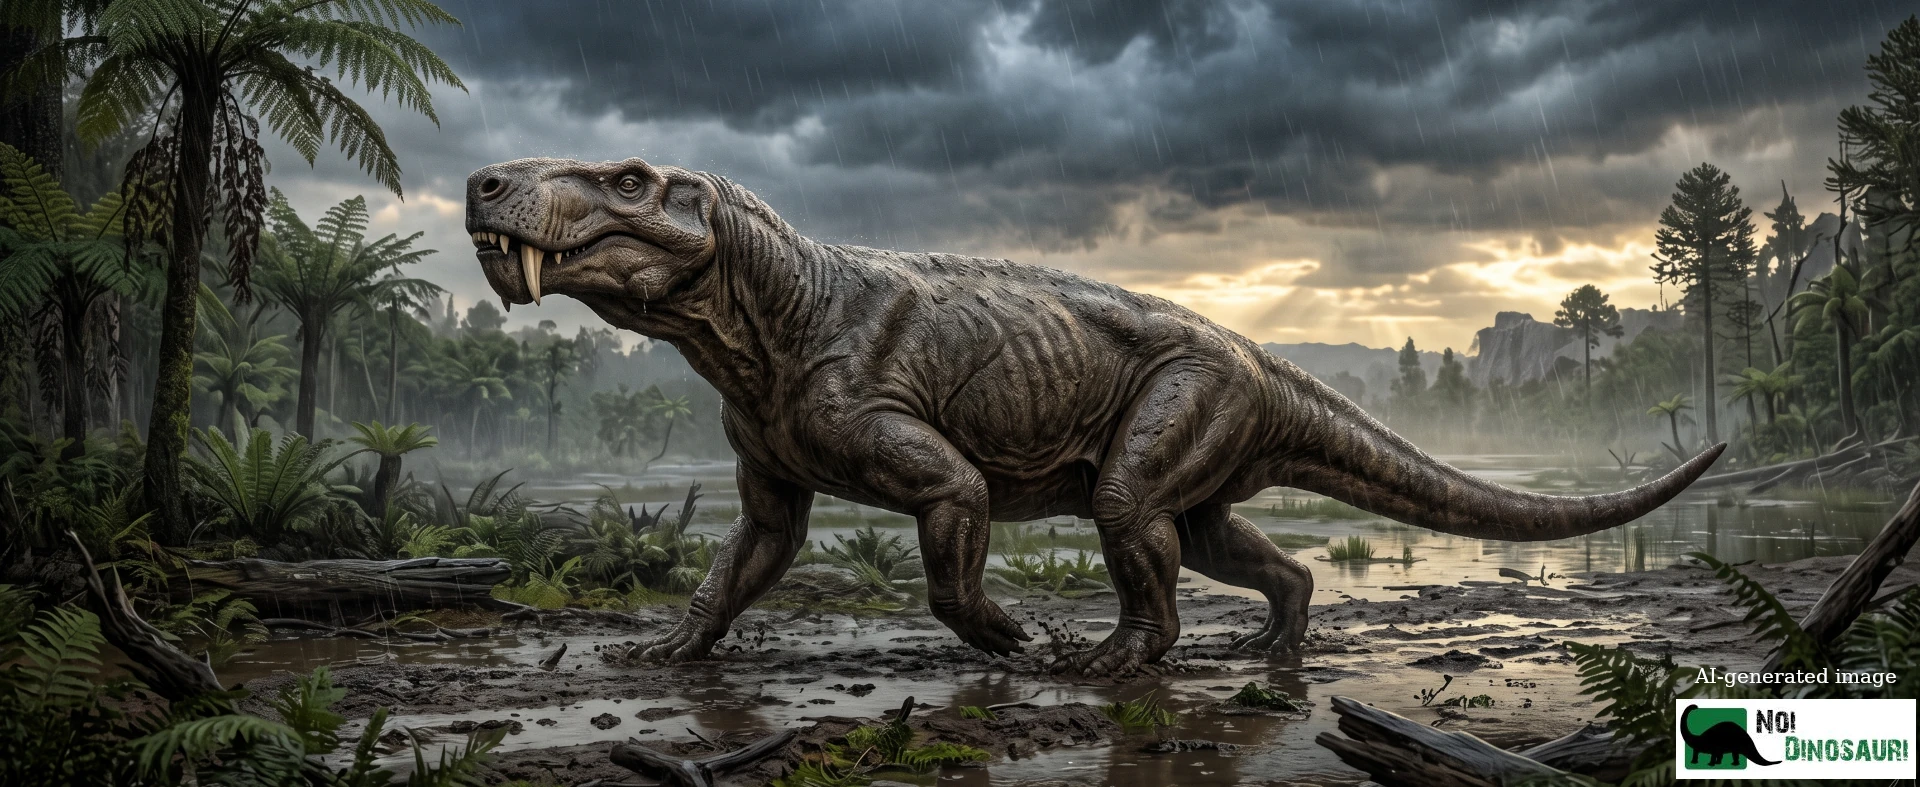
Inostrancevia
Molto prima che il primo dinosauro calcasse la Terra, il terrore aveva il sangue già tiepido e due zanne a sciabola. Inostrancevia non è un dinosauro, né un rettile nel senso moderno del termine: è un terapside gorgonopside, un nostro lontano parente "mammalifero" (sinapside) che dominava un mondo destinato a bruciare.

Inostrancevia: Storia, caratteristiche e curiosità
I resti di questo superpredatore riemersero nel 1899 dalle sabbie del fiume Dvina Settentrionale, in Russia, grazie agli scavi pionieristici del paleontologo Vladimir Amalitsky. Tuttavia, la descrizione ufficiale arrivò solo nel 1922, pubblicata postuma, poiché Amalitsky era scomparso cinque anni prima, nel 1917, con il nome scelto in onore del geologo russo Aleksandr Inostrantsev. Oggi, gli scheletri articolati più completi e spettacolari, veri e propri monumenti all'evoluzione dei sinapsidi, dominano le sale del Paleontological Institute dell'Accademia Russa delle Scienze (PIN) a Mosca.
Specie note
Oggi il genere comprende tre specie riconosciute: Inostrancevia alexandri Amalitsky, 1922 (la specie tipo, dalla Dvina Settentrionale), I. latifrons (Pravoslavlev, 1927) e la recentissima I. africana Kammerer, 2023 dal Karoo sudafricano. La sistematica interna è storicamente intricata: per decenni I. latifrons è stata avvicinata o separata dal genere Pravoslavlevia, e i confini tra le specie russe sono ancora dibattuti.
Curiosità lessicale: il nome onora Aleksandr Inostrantsev, geologo di San Pietroburgo e maestro di Amalitsky, il che rende Inostrancevia un raro esempio di fossile che porta, letteralmente, il nome della propria scuola scientifica.
| Specie | Scoperta | Luogo di Ritrovamento | Taglia e Cranio | Caratteristiche Distintive |
|---|---|---|---|---|
| Inostrancevia alexandri | Amalitsky, 1922 | Fiume Dvina Settentrionale, Russia | Lunghezza corporea stimata fino a 3 m; crani di oltre 50 cm. | Occipite relativamente stretto, finestra temporale larga e ovale, denti presenti sulla flangia trasversale dello pterigoide. |
| Inostrancevia latifrons | Pravoslavlev, 1927 | Russia | Morfologia estremamente robusta, considerato tra i più massicci gorgonopsidi noti. | Muso comparativamente più basso e largo, regione parietale ingrandita, minor numero di denti e tuberosità palatali meno sviluppate. |
| Inostrancevia africana | Kammerer et al., 2023 | Bacino del Karoo, Sudafrica | Crani olotipo e paratipo di 44,2 e 48,1 cm di lunghezza. | Orbita nettamente più grande della finestra temporale, forte restringimento dell'osso jugale sotto l'orbita, foro pineale in una profonda depressione parietale, osso dentale altamente rialzato e massiccio. |
Per capire cosa rendesse Inostrancevia così letale, non basta guardare le sue dimensioni (sorprendentemente contenute) ma occorre smontare, pezzo per pezzo, l'architettura del suo corpo. Ogni dettaglio anatomico di questo animale racconta la storia di un esperimento evolutivo irripetibile: un organismo che stava esplorando soluzioni biologiche, dalla dentizione alla postura, dal metabolismo al tegumento, che milioni di anni dopo sarebbero state perfezionate nei mammiferi. Ma Inostrancevia non era un mammifero, né un rettile: era qualcosa di radicalmente diverso, un progetto di superpredatore che la natura non avrebbe mai più replicato.
Inostrancevia - Caratteristiche distintive
Pugnali di Smalto
Le zanne superiori di Inostrancevia potevano raggiungere i 15 centimetri di lunghezza. Immaginate due lame da macellaio incastonate in un cranio massiccio, capaci di squarciare pelli spesse come giubbotti antiproiettile.
Come lo sappiamo? Le moderne scansioni micro-TAC (Tomografia Assiale Computerizzata) condotte sui crani dei gorgonopsidi (come i lavori di Kammerer e colleghi) rivelano che le radici di questi canini si estendevano in profondità nella mascella superiore, garantendo l'ancoraggio necessario per resistere alle tremende forze di torsione durante la lotta.
Il Profilo di un Cacciatore Sensoriale
Le grandi orbite e le cavità nasali sviluppate suggeriscono un predatore che affidava molto alla vista e, soprattutto, all'olfatto. Essenziale per localizzare prede corazzate in una pianura polverosa e per riconoscere i rivali. La presenza di ampi forami facciali sul muso ha fatto discutere sulla possibilità di una zona cutanea ricca di terminazioni nervose, forse persino con peli tattili rudimentali come quelli delle vibrisse dei monotremi(ad esempio l’Ornitorinco) . Attenzione però: per Inostrancevia non abbiamo prove dirette, e l'interpretazione dei forami è ancora controversa. E’ un'ipotesi affascinante, non un fatto.
L'Ingegneria di un Morso Estremo
L'articolazione temporo-mandibolare funzionava come le cerniere di una cassaforte, permettendo al cranio di scattare all'indietro. Il suono sordo dello schiocco delle mascelle che si chiudevano doveva riecheggiare lugubre nelle pianure aride.
Un Mantello al Confine tra Due Mondi
Se aveste potuto accarezzare un Inostrancevia, non avreste sentito scaglie fredde. La texture era probabilmente simile al cuoio di un rinoceronte, ruvida e spessa, forse costellata da ghiandole e radi peli sensoriali sul muso.
Come lo sappiamo? Non possediamo impronte dirette della pelle di questo genere, ma i coproliti (feci fossili) del Permiano contenenti presunti peli e i resti di pelle ghiandolare in altri terapsidi, anche se appartenenti a rami basali come il dinocefalo Estemmenosuchus, portano i paleontologi a dedurre un tegumento privo di squame, transizionale verso quello dei veri mammiferi.
Un Corpo Costruito per lo Scatto, non per la Resa dei Conti Prolungata
Le zampe di Inostrancevia erano posizionate più sotto il corpo rispetto a quelle di un rettile tipico, ma non ancora verticali come quelle di un mammifero: una postura intermedia, detta semi-eretta. Questo significa che l'animale non era un maratoneta: poteva sprigionare accelerazioni devastanti in pochi metri, ma non inseguire una preda per chilometri sotto il sole permiano. La coda lunga e muscolosa agiva da contrappeso durante lo scatto dell'agguato e il colpo di mascelle. Anche il metabolismo resta oggetto di dibattito: la maggior parte dei ricercatori ritiene che i terapsidi di questo livello avessero un metabolismo intermedio, più simile a quello di un varano gigante che a quello di un mammifero, forse con una mesotermia (o 'endotermia incipiente'), un'altra pietra miliare sulla strada verso i mammiferi.
La cultura pop e le serie TV (dalla britannica Primeval fino alla recente e fortunata produzione Netflix Life on Our Planet del 2023, che lo mostra in un duello con Scutosaurus) hanno spesso ingigantito i gorgonopsidi trasformandoli in mostri grandi quanto elefanti capaci di ribaltare automobili. La realtà scientifica è meno hollywoodiana, ma altrettanto letale: le specie più grandi (Inostrancevia alexandri e I. latifrons) raggiungevano una lunghezza massima di circa 3 - 3,5 metri, con un cranio di 60 centimetri. Il peso è stimato tra i 250 e i 300 chilogrammi, paragonabile a quello di una grande tigre siberiana o di un leone maschio. Queste proporzioni sono misurate direttamente sugli scheletri eccezionalmente completi rinvenuti da Amalitsky.
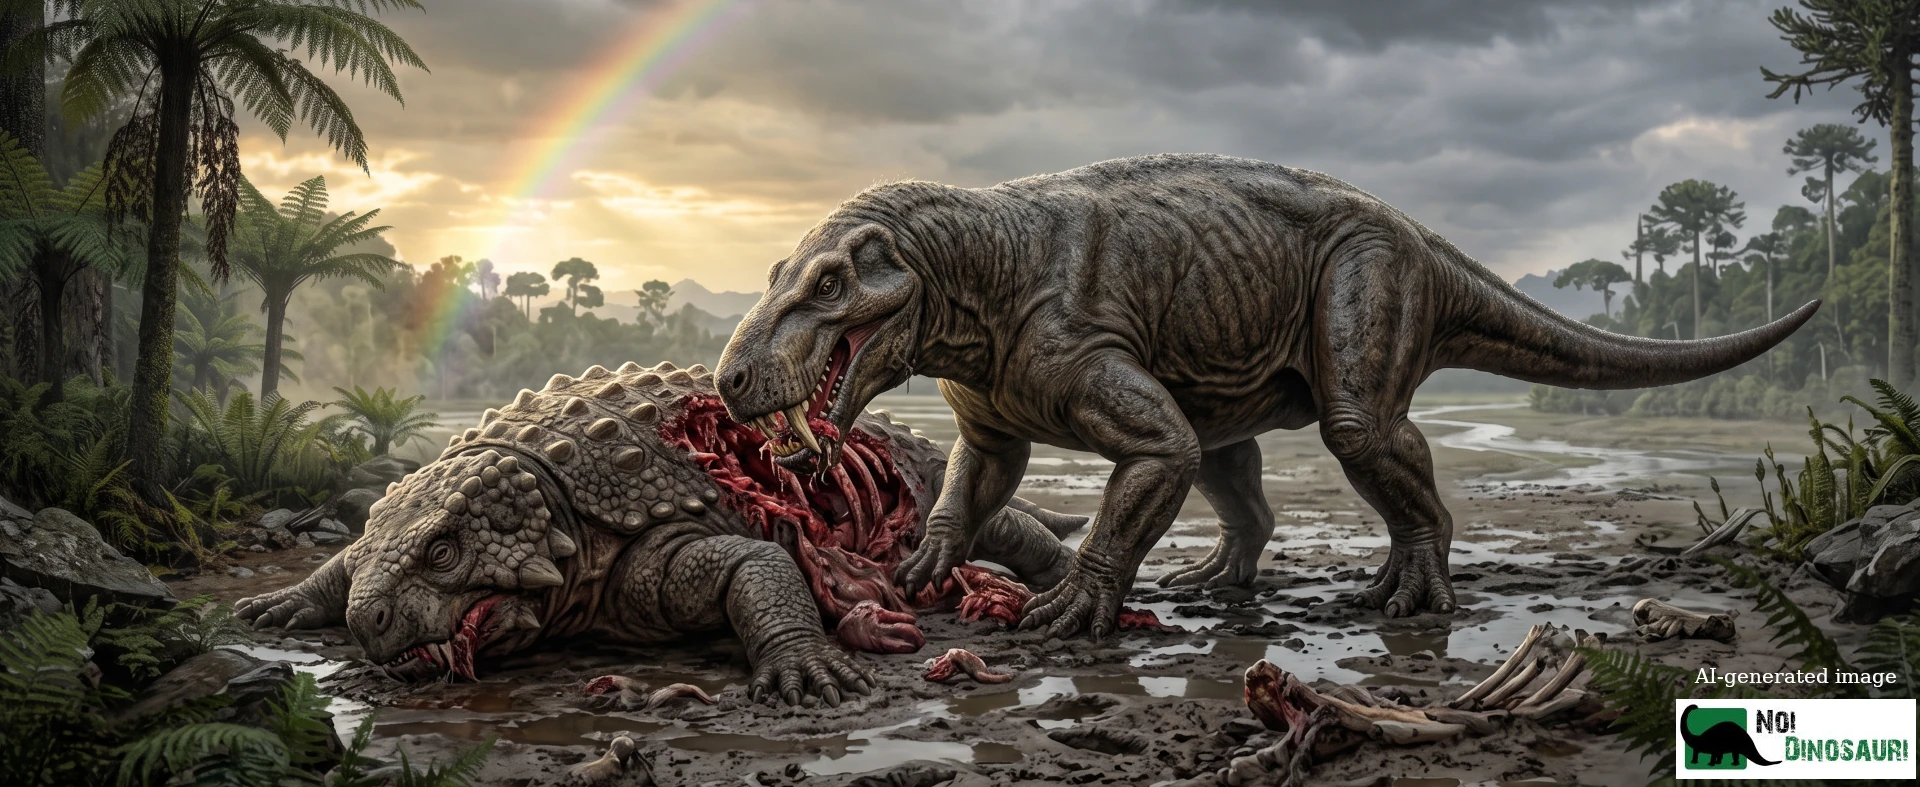
Era l'apice assoluto della catena alimentare del Permiano Superiore (Wuchiapingiano - Changhsingiano). La sua strategia di caccia non si basava sull'inseguimento prolungato, ma sull'agguato fulmineo e sul morso letale per dissanguare grandi prede corazzate. Abitava il supercontinente Pangea, con i fossili storicamente concentrati nella Russia europea (Laurasia) e, come ora sappiamo, anche nel Gondwana meridionale (Sudafrica e Mozambico) proprio in chiusura del Permiano.
Habitat - Il suo ecosistema era caratterizzato da vaste pianure alluvionali stagionali, foreste di felci arboree, peltasperme e primitive conifere, flagellate da monsoni implacabili. Qui, Inostrancevia condivideva il territorio e si nutriva, di erbivori colossali e corazzati come il pareiasauro Scutosaurus e grandi dicinodonti come Vivaxosaurus.
Approfondisci dettagli sulla riproduzione
Nessun nido o fossile di neonato (hatchling) attribuibile con certezza a Inostrancevia è mai stato scoperto, costringendo la scienza ad affidarsi al "phylogenetic bracketing" (confronto filogenetico con parenti vicini). Le uova non avevano il guscio rigido degli uccelli, ma una consistenza coriacea e permeabile, simile a quella dei moderni monotremi (come l'Ornitorinco) o di alcuni rettili. I piccoli alla nascita dovevano essere vulnerabili e si suppone necessitassero di siti di nidificazione riparati, anche se il grado di cure parentali resta un mistero aperto: probabilmente superiore a quello dei rettili basali, ma non ancora complesso come nei mammiferi moderni.
Approfondisci dettagli sull' estinzione
La causa scatenante fu l'eruzione colossale dei Trappi Siberiani, che saturò l'atmosfera di gas serra, innescando un riscaldamento globale estremo, piogge acide e il collasso delle catene alimentari. La comunità scientifica ha recentemente fatto una scoperta sorprendente: uno studio del 2023 (Kammerer et al.) ha dimostrato che, proprio durante le fasi iniziali della crisi, Inostrancevia probabilmente spinto verso sud dal progressivo deterioramento climatico e dalla desertificazione dell'Eurasia, migrò a migliaia di chilometri di distanza, invadendo il Bacino del Karoo (attuale Sudafrica) e sostituendo i gorgonopsidi endemici locali ormai estinti. Il reperto, così distinto dalle specie russe da meritare un nome proprio, riconoscibile per dettagli come la posizione del forame pineale, adagiato in una depressione a forma di scanalatura, e per la rugosità sulla faccia laterale del prefrontale, è stato battezzato Inostrancevia africana Kammerer, 2023. Nel 2025 un secondo esemplare attribuito al genere è stato segnalato nel Metangula Graben, in Mozambico, confermando che l'espansione africana di Inostrancevia non fu un episodio isolato. . Una resilienza straordinaria che però non bastò: con la morte degli erbivori, anche l'ultimo Inostrancevia collassò. Il vuoto ecologico lasciato da questi superpredatori rimase aperto per milioni di anni, per poi essere conquistato nel Triassico da nuovi predatori principalmente arcosauriformi — fra cui pseudosuchi e eritrosuchi, antenati dei coccodrilli e, più indirettamente, dei dinosauri.
Curiosità - Lo sapevi che?
Rompersi un canino lungo 15 centimetri contro la corazza di uno Scutosaurus non era una condanna a morte: Inostrancevia era polifiodonte. Ogni mascella ospitava due alveoli canini, uno con il dente funzionale e uno con il dente "di scorta" già in formazione, pronto a ruotare in posizione non appena il predecessore veniva perso o danneggiato. Le scansioni ai raggi X dei crani mostrano questi canini di riserva già formati in attesa. Alcuni ricercatori (ipotesi di Kermack, 1984) ritengono tuttavia che le sostituzioni fossero in numero finito, con un'ultima dentizione "definitiva": un primo, imperfetto passo verso la condizione difiodonte( due dentizioni, come nei mammiferi) che caratterizza i nostri successori evolutivi.
Musei che ospitano fossili di: Inostrancevia
Elenco dei Musei e link ai siti web
Orlov Paleontological Museum (Mosca, Russia)
Cosa vedi: Fossili originali di Inostrancevia alexandri e I. latifrons, inclusi crani completi e scheletri articolati
Link: Sito ufficiale
Info: Parte del Paleontological Institute della Russian Academy of Sciences, ospita la collezione originale di Amalitsky
MUSE - Museo delle Scienze di Trento (Trento, Italia)
Cosa vedi: Calco in gesso di uno dei primi scheletri descritti di I. alexandri (PIN 1758)
Link: Sito ufficiale
Info: Museo progettato da Renzo Piano, aperto nel 2013
Field Museum (Chicago, USA)
Cosa vedi: Repliche a grandezza naturale di Inostrancevia insieme ad altri terapsidi del Permiano
Link: Sito ufficiale
Info: Le repliche fanno parte delle esibizioni sui "mammal-like reptiles"
Iziko South African Museum (Città del Capo, Sudafrica)
Cosa vedi: Collezioni di paleontologia del Karoo con possibili gorgonopsidi
Link: Sito ufficiale
Info: Attualmente chiuso per manutenzione, ma possiede importanti collezioni di terapsidi
Karoo Origins Fossil Centre (Graaff-Reinet, Sudafrica)
Cosa vedi: 107 esemplari di fossili del Karoo, inclusi terapsidi e gorgonopsidi
Link: Sito ufficiale
Info: Aperto nel 2025, vanta la più grande collezione al mondo di fossili holotipo del Karoo
Elenco e link alle fonti
Kammerer, C. F., Viglietti, P. A., et al. (2023). Rapid turnover of top predators in African terrestrial faunas around the Permian-Triassic mass extinction. Current Biology, 33(11), 2283-2290.
Link: https://doi.org/10.1016/j.cub.2023.04.007
Amalitsky, V. P. (1922). Diagnoses of the new forms of vertebrates and plants from the upper Permian of North Dvina. Bulletin de l'Académie des Sciences de Russie.
Link: https://www.researchgate.net/publication/319881823 (Nota: Essendo un bollettino storico russo del 1922, non esiste un DOI moderno; questo link punta a una pubblicazione accademica che ne cita e discute integralmente il lavoro originale).
Kemp, T. S. (2005). The Origin and Evolution of Mammals. Oxford University Press.
Link: https://doi.org/10.1093/oso/9780198507604.001.0001
Paleobiology Database (PBDB). Inostrancevia (Dati di raccolta dal bacino del fiume Dvina Settentrionale, Wuchiapingiano/Changhsingiano).
Link: https://paleobiodb.org/classic/checkTaxonInfo?taxon_no=39127
Pravoslavlev, P. A. (1927). Gorgonopsidae from the North Dvina Expedition of V. P. Amalitzkii. Severo-Dvinskie raskopi Prof. V. P. Amalitskogo, 3.
Link: https://www.researchgate.net/publication/237824910 (Contesto storico e riferimenti alle collezioni di Sokolki dell'Istituto Paleontologico di Mosca).
Kammerer, C. F., & Masyutin, V. G. (2018). Gorgonopsian therapsids (Nochnitsa gen. nov. and Viatkogorgon) from the Permian Kotelnich locality of Russia. PeerJ, 6, e4954.
Link: https://doi.org/10.7717/peerj.4954
Whitney, M. R., & Sidor, C. A. (2019). Histological and developmental insights into the herbivorous dentition of tapinocephalid therapsids. PLoS ONE, 14(10), e0223860.
Link: https://doi.org/10.1371/journal.pone.0223860
Kermack, K. A. (1956). Tooth replacement in mammal-like reptiles of the suborders Gorgonopsia and Therocephalia. Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences, 240(669), 95-133.
Link: https://doi.org/10.1098/rstb.1956.0010